中文翻译由人工智能辅助完成,尚待母语者审校。

进化仍在继续

进化并没有停止

这条链并没有在你这里结束。每一代中,有些可遗传的变异变得更常见一点,另一些变得更少见一点。通常这太慢,看不出来。有时它快到在一个人的一生中就能测量到。

这里说的“进化”是什么意思

当一个群体中可遗传变异的出现频率从一代到下一代发生变化时,这个群体就在进化。个体在一生中并不进化;群体才会在世代之间进化。进化并不意味着变得更好或更高级,只是更适应当时的条件,有时甚至连这一点也做不到。

有多快?

每个圆点代表下面的一个例子,按照变化大约用了多少年来摆放。刻度每一格放大十倍。空心圆点表示非常不确定。雀鸟和大象大约在一代之内就发生了变化;人类的例子则用了数百代。

  1. 5 干旱之后的雀鸟喙一代
  2. 4 没有象牙的大象约 25 年
  3. 6 新岛上的蜥蜴约 35 年
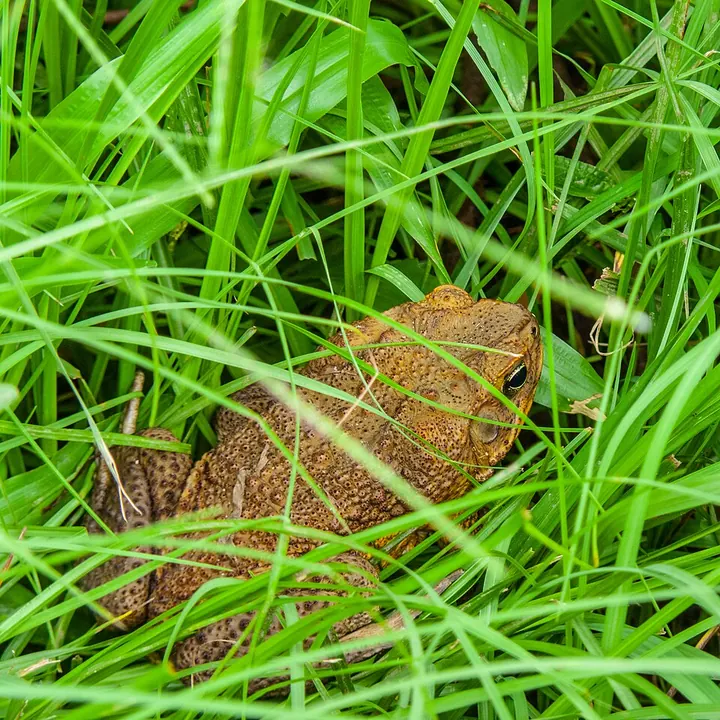
  4. 7 扩散得更快的蟾蜍约 70 年
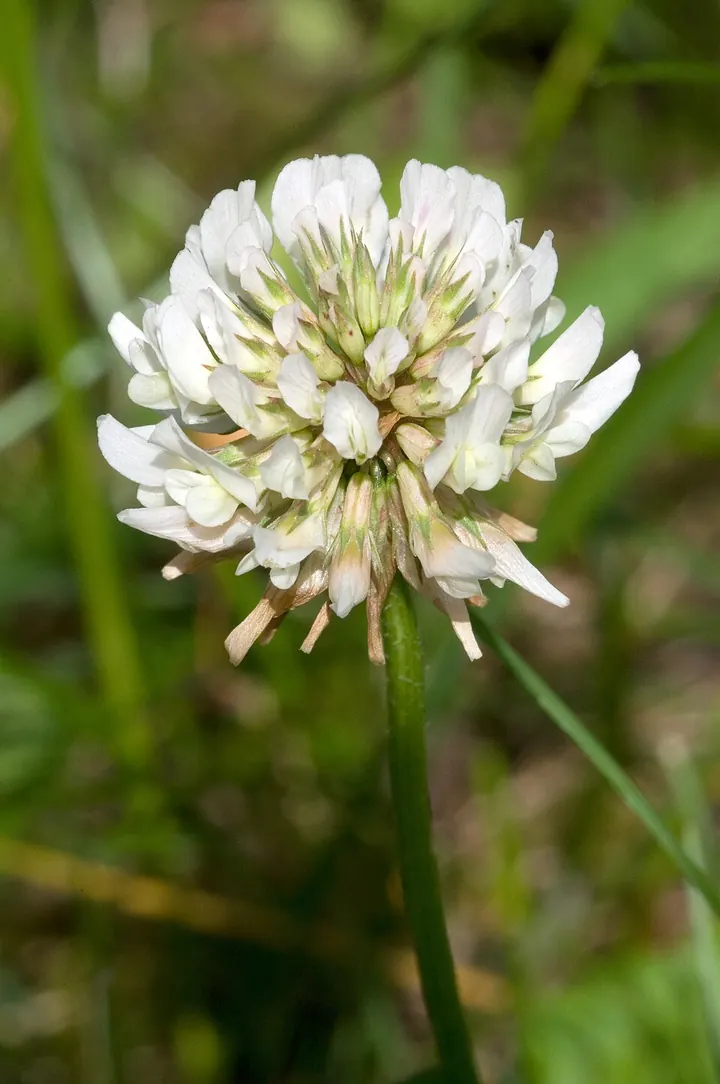
  5. 8 城市里的三叶草几十年到几百年
  6. 3 脾脏更大的潜水者未知;他们以海为生至少已有 1000 年
  7. 1 成年后喝牛奶最近 7500 年之内
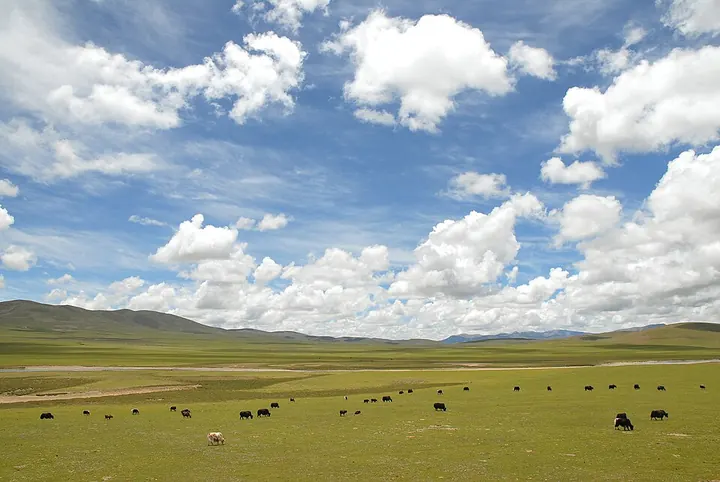
  8. 2 呼吸稀薄的空气也许约 9000 年,非常不确定

人类中 自然界中

人类中

照片: Martin Abegglen · CC BY-SA 2.0

1 成年后喝牛奶

在哪里
欧洲、东非、中东
用了多久
最近 7500 年之内

和其他哺乳动物一样,大多数人在童年之后就不再制造乳糖酶——一种消化奶中糖分的酶。有些人则一直保持开启。让它保持开启的变异在畜牧民族中独立出现过好几次,并在人们开始饲养牛和山羊之后扩散开来。今天,全世界大约三分之一的成年人能轻松消化牛奶,不同地区差别很大。

我们怎么知道

古 DNA 显示,最常见的欧洲变异在大约 5000 年前仍然很少见,后来才变得常见。在东非和中东,另一些变异起着同样的作用。

注意: 这些变异为什么扩散得这么快,仍有争议。人们在这些变异普及之前很久就开始喝奶了。一种观点认为,在饥荒和瘟疫中,牛奶会在最糟糕的时候让没有这种变异的人生病,所以携带者更容易活下来。
照片: Luo Shaoyang from Beijing, China · CC BY 2.0

2 呼吸稀薄的空气

在哪里
青藏高原
用了多久
也许约 9000 年,非常不确定

在海拔 4000 米处,每一口气所含的氧气比海平面少约 40%。任何人到了那么高的地方都会多造红细胞,而在一些低地人身上,这种反应会过头,使血液变稠。大多数藏族人携带 EPAS1 基因的一种版本,它能抑制这种反应。

我们怎么知道

在附近低地的汉族人中,这种版本几乎不存在。它的 DNA 与丹尼索瓦人——一个已灭绝的人类群体——的 DNA 相吻合,因此它很可能是在数万年前两个群体相遇时,进入了藏族人的祖先之中。一项估计认为它大约在 9000 年前开始扩散,但估计的范围很宽。

注意: 安第斯山区的人们以其他方式适应了高海拔。进化可以通过不同的途径达到相似的结果。

照片: Marcin Falenczyk · CC BY-SA 3.0

3 脾脏更大的潜水者

在哪里
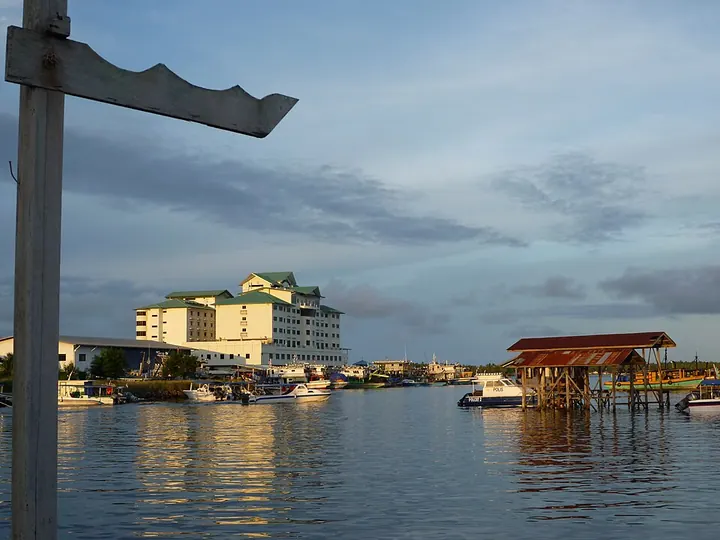
东南亚的巴瑶人
用了多久
未知;他们以海为生至少已有 1000 年

巴瑶人以海为生至少已有一千年,有些人每天潜水好几个小时,每次只靠一口气。潜水时,脾脏会向身体挤出额外的富氧血液。巴瑶人的脾脏比他们在陆地上生活的邻居大约 50%,即使是那些不潜水的人也是如此。

我们怎么知道

巴瑶人中潜水者和不潜水者的脾脏都更大,这说明是遗传而不是训练。一种与脾脏大小相关的基因变异在他们中间很常见。

注意: 这只是一项研究,对象不到一百人,而且还没有被重复验证。

自然界中

照片: PDUSGov · Public domain

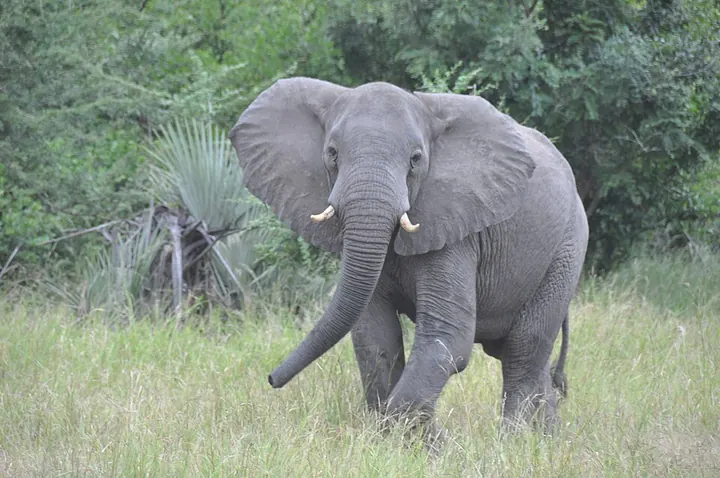
4 没有象牙的大象

在哪里
莫桑比克戈龙戈萨国家公园
用了多久
约 25 年

在 1977 年至 1992 年的内战中,公园里约 90% 的大象被杀,许多是为了象牙。生来没有象牙的母象更有可能活下来。在熬过战争的母象中,约一半没有象牙,而战前大约五头中才有一头。在它们战后出生的女儿中,约三分之一没有象牙。

我们怎么知道

研究人员发现这一性状随 X 染色体遗传,并把它与塑造牙齿的基因联系起来。他们认为同一变异对雄象是致命的,这可以解释为什么几乎从未见过没有象牙的雄象。

注意: 这一变化是由战争期间的象牙猎杀推动的。象牙对大象很重要:它们用它挖掘、剥树皮,所以这种变化是有代价的。

照片: Charles J. Sharp · CC BY-SA 3.0

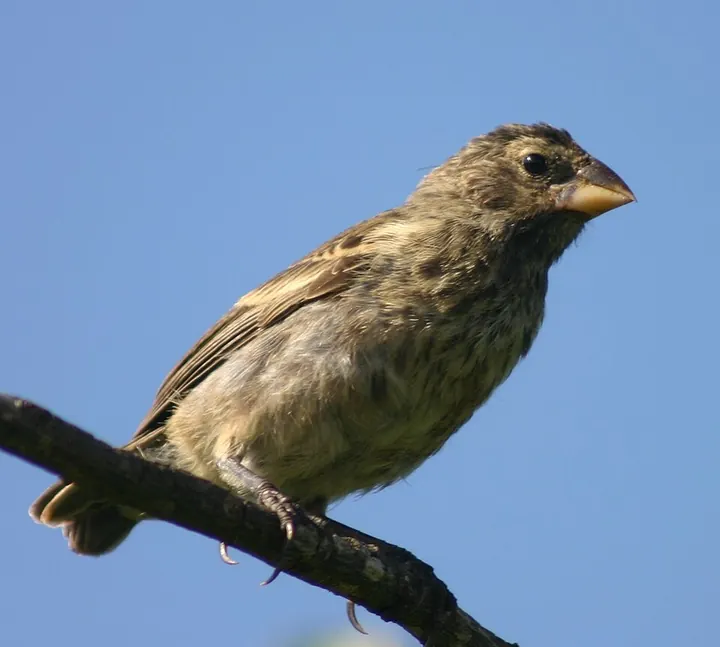
5 干旱之后的雀鸟喙

在哪里
加拉帕戈斯群岛大达夫尼岛
用了多久
一代

在 1977 年的干旱中,一座小岛上的小而软的种子被吃光了。喙更厚的中嘴地雀能咬开剩下的又大又硬的种子,活下来的更多。它们的后代长出的喙平均比上一代厚约 4%。

我们怎么知道

彼得·格兰特和罗斯玛丽·格兰特四十年间年复一年地测量了岛上几乎每一只鸟,能够追踪亲代和子代。

注意: 在后来的年份里,方向反转了:多雨的年份更有利于较小的喙。进化跟随环境条件;它没有目标。

到进化实验室亲自试试 →
照片: Mariomassone · CC BY-SA 4.0

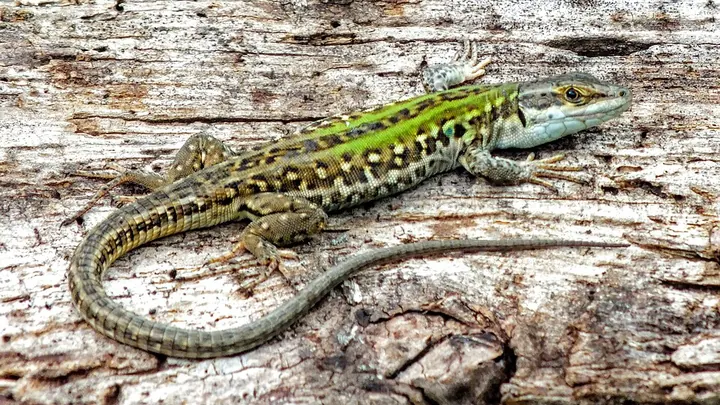
6 新岛上的蜥蜴

在哪里
克罗地亚波德姆尔恰鲁岛
用了多久
约 35 年

1971 年,研究人员把五对意大利壁蜥迁到一座昆虫少、植物多的小岛上。2004 年至 2006 年科学家回去时,植物已占它们食物的三分之一到一半以上,而在原来的岛上只占百分之几。它们的头变大了,咬合力更强,肠道里还长出了这个物种其他种群中没有的小瓣膜,可以减慢食物通过,以便消化。

我们怎么知道

岛上蜥蜴的线粒体 DNA 与它们原来所在种群的无法区分。

注意: 部分变化可能来自每只蜥蜴在这种食物下的成长方式,而不是基因的改变。哪部分是哪种原因,还不完全清楚。

照片: John Robert McPherson · CC BY-SA 4.0

7 扩散得更快的蟾蜍

在哪里
澳大利亚北部
用了多久
约 70 年

海蟾蜍于 1935 年被引入澳大利亚,用来吃甘蔗田里的甲虫,随后扩散到全国各地。入侵前线的蟾蜍腿更长,每晚走得比较老种群里的蟾蜍更远。前线最初每年推进约 10 公里,现在每年超过 50 公里。

我们怎么知道

研究人员用无线电标签追踪蟾蜍,并在整个分布区内,从最老的种群到最新的种群,测量了它们的腿。

注意: 出现这种情况,部分是因为跑得最快的蟾蜍最后聚集在前线并彼此繁殖,而不仅仅是因为快的蟾蜍更容易存活。

照片: Amada44 · Public domain

8 城市里的三叶草

在哪里
26 个国家的 160 座城市
用了多久
几十年到几百年

白三叶能产生氰化物,以吓退吃它的动物。在被研究的城市中,约有一半的城市里,市中心的植株产生氰化物的频率低于周边乡村的植株。同样的变化在不同的城市里一次又一次地独立发生。

我们怎么知道

280 多名研究人员沿着从城市到乡村的路线采集了约 11 万株植物,并逐一检测了氰化物。他们还在 26 座城市中读取了约 2000 株植物的基因组。

注意: 城市为什么偏向不产氰化物的三叶草,各地原因并不相同。食草动物较少和温度不同都是可能的原因。

医学让人类停止进化了吗?

  • 没有。每个孩子出生时,DNA 里大约有 70 处父母都没有的新变化。这些新变异是原材料,本身并不是选择。
  • 有些人仍然比别人生更多的孩子,原因很多,研究把其中一部分与可遗传的变异联系起来。选择改变了,并没有停止。
  • 在进化中,“适合度”只表示一个人有多少个孩子。它与一个人的健康、才能或价值毫无关系。
  • 偶然也会改变变异的频率,在小群体中尤其如此。
  • 改变的是什么有帮助、什么有害。医学、食物和城市如今都是我们环境的一部分,就像干旱是雀鸟环境的一部分一样。

你的祖先从来不是成品,你也不是。你是一条仍在延长的链上的一环。

延伸阅读

  1. Itan et al. 2009. The origins of lactase persistence in Europe. PLoS Computational Biology 5: e1000491. doi:10.1371/journal.pcbi.1000491
  2. Itan et al. 2010. A worldwide correlation of lactase persistence phenotype and genotypes. BMC Evolutionary Biology 10: 36. doi:10.1186/1471-2148-10-36
  3. Ségurel & Bon 2017. On the evolution of lactase persistence in humans. Annual Review of Genomics and Human Genetics 18: 297. doi:10.1146/annurev-genom-091416-035340
  4. Tishkoff et al. 2007. Convergent adaptation of human lactase persistence in Africa and Europe. Nature Genetics 39: 31. doi:10.1038/ng1946
  5. Evershed et al. 2022. Dairying, diseases and the evolution of lactase persistence in Europe. Nature 608: 336. doi:10.1038/s41586-022-05010-7
  6. Huerta-Sánchez et al. 2014. Altitude adaptation in Tibetans caused by introgression of Denisovan-like DNA. Nature 512: 194. doi:10.1038/nature13408
  7. Zhang et al. 2021. The history and evolution of the Denisovan-EPAS1 haplotype in Tibetans. PNAS 118: e2020803118. doi:10.1073/pnas.2020803118
  8. Ilardo et al. 2018. Physiological and genetic adaptations to diving in sea nomads. Cell 173: 569. doi:10.1016/j.cell.2018.03.054
  9. Campbell-Staton et al. 2021. Ivory poaching and the rapid evolution of tusklessness in African elephants. Science 374: 483. doi:10.1126/science.abe7389
  10. Boag & Grant 1981. Intense natural selection in a population of Darwin’s finches. Science 214: 82. doi:10.1126/science.214.4516.82
  11. Grant & Grant 2002. Unpredictable evolution in a 30-year study of Darwin’s finches. Science 296: 707. doi:10.1126/science.1070315
  12. Herrel et al. 2008. Rapid large-scale evolutionary divergence in morphology and performance associated with exploitation of a different dietary resource. PNAS 105: 4792. doi:10.1073/pnas.0711998105
  13. Phillips et al. 2006. Invasion and the evolution of speed in toads. Nature 439: 803. doi:10.1038/439803a
  14. Shine, Brown & Phillips 2011. An evolutionary process that assembles phenotypes through space rather than through time. PNAS 108: 5708. doi:10.1073/pnas.1018989108
  15. Santangelo et al. 2022. Global urban environmental change drives adaptation in white clover. Science 375: 1275. doi:10.1126/science.abk0989
  16. Stearns et al. 2010. Measuring selection in contemporary human populations. Nature Reviews Genetics 11: 611. doi:10.1038/nrg2831
  17. Jónsson et al. 2017. Parental influence on human germline de novo mutations in 12,000 trios. Nature 549: 519. doi:10.1038/nature24018

分享这个页面

TelegramWhatsAppX